


 Servicios personalizados

 texto en
 Inglés (pdf)
 Articulo en XML
 Referencias del artículo

 Traducción automática
 Enviar articulo por email
 Citado por SciELO
 Citado por Google
 Similares en
SciELO
 Similares en Google

 Permalink

INTRODUCCIÓN
El hueso es un órgano metabólicamente activo que se remodela continuamente a lo largo de nuestra vida. El proceso de remodelado óseo, en el que se acoplan resorción y formación de hueso, sirve para ajustar la arquitectura ósea a las necesidades mecánicas del hueso. Además, el hueso es el principal órgano de almacenamiento de calcio, fósforo y magnesio. Las concentraciones plasmáticas de estos minerales dependen del balance entre la formación y la resorción ósea, regulada por hormonas como la parathormona (PTH), la calcitonina y la 1,25-dihidroxi vitamina D (1). Este proceso se encuentra mediado por osteoblastos y osteoclastos que llevan a cabo formación y resorción ósea de manera coordinada, respectivamente. Además, un tercer tipo de células óseas, los osteocitos, actúan como sensores de estimulación mecánica y son capaces de comunicarse con osteoblastos y osteoclastos modulando su actividad (2,3).
Aunque no todos los tumores sólidos metastatizan al hueso, este representa un órgano diana habitual en la diseminación metastásica de cánceres como el de próstata, mama, pulmón, riñón y tiroides, siendo la aparición de la enfermedad metastásica una grave amenaza en la tasa de supervivencia de pacientes que desarrollan este tipo de tumores (4,5). La metástasis a hueso es una complicación frecuente en fases avanzadas de pacientes con cáncer de próstata, uno de los tumores con mayor mortalidad y morbilidad en países desarrollados (6). Los tumores provocan dos tipos diferentes (aunque no excluyentes) de lesiones esqueléticas. La forma más común, representada por ejemplo por el cáncer de mama, es la lesión osteolítica, asociada a alteración del remodelado óseo ocasionada por el incremento en la actividad osteoclástica y la consiguiente osteólisis (7-10). Por otro lado, existe un segundo tipo de lesiones denominadas osteoblásticas, características por ejemplo del cáncer de próstata, caracterizadas por un incremento en la actividad de los osteoblastos, aumento de osteoide y de la tasa de mineralización (11,12). No obstante, actualmente se reconoce la existencia de un componente resortivo mediado por los osteoclastos como paso previo para el establecimiento de lesiones osteoblásticas (11,12).
Recientes estudios han descrito cambios prometastásicos en órganos donde más tarde aparecerán metástasis (13). Tales cambios inducen la formación de nichos premetastásicos que favorecen la implantación de células tumorales en ciertos órganos diana (13). La complejidad celular del hueso, así como su continua regulación del metabolismo y remodelado óseo, plantean la posibilidad de que la formación del nicho premetastásico óseo sea consecuencia de una red compleja de modificaciones combinadas o secuenciales de las funciones celulares óseas (14). Evitar las distintas etapas necesarias para que la célula tumoral abandone el tumor primario, migre y se establezca en el microambiente óseo es una de las principales estrategias para prevenir la diseminación de las metástasis óseas (14). La invasión de células de tumor primario a nichos esqueléticos se asocia con la activación de células óseas que liberan factores de crecimiento y citoquinas, que a su vez promueven el crecimiento del tumor en las metástasis (4). Como resultado se genera el denominado “ciclo vicioso” de las metástasis óseas, que varía la fisiología del hueso y altera el remodelado óseo (4).
MINDIN, también conocida como espondina-2, es una proteína secretada de la matriz extracelular perteneciente a la clase de moléculas que contienen repeticiones de trombospondina de tipo 1. Se ha sugerido recientemente que MINDIN actúa como biomarcador de diagnóstico específico del cáncer de próstata (15,16), encontrándose una mayor concentración de esta proteína en suero de pacientes con cáncer de próstata y metástasis óseas (17). También se ha observado que MINDIN es una proteína altamente expresada en otros tumores, como el cáncer de pulmón (18), hígado (19,20), colorrectal (CRC) (21), gástrico (22), carcinoma renal de células claras (23), ovario (24), mama (25), pancreático (26) y adenocarcinoma de Barrett (27). Aunque la sobreexpresión de MINDIN está significativamente asociada con la progresión de los tumores colorrectales, de próstata y de ovario, utilizándose como predictor de un mal pronóstico de supervivencia, el papel de MINDIN en otros tumores es controvertido debido a la falta de estudios e información (19,20,22,24-32). Cabe destacar que MINDIN es capaz de inducir en las células tumorales prostáticas proliferación, migración y la adquisición de características moleculares propias del hueso, proceso conocido como osteomimetismo (33,34). Además, MINDIN es capaz de modificar la expresión de marcadores osteoblásticos y osteoclásticos del entorno óseo, observándose un incremento de la expresión génica de la fosfatasa ácida resistente al tartrato (TRAP) y osterix, así como un incremento de la expresión proteica de TRAP. Estos cambios han sugerido que MINDIN podría favorecer la progresión tumoral y la formación de metástasis óseas (33,34).
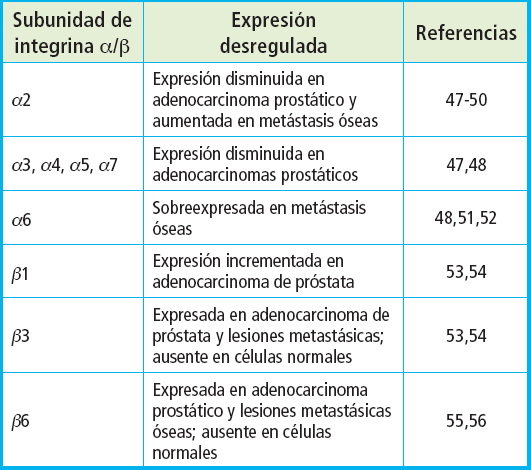
Las integrinas son receptores transmembrana heterodiméricos formados por subunidades alfa y beta que funcionan como moléculas de anclaje y señalización celular (35). Existen 18 subunidades alfa y 8 subunidades beta, dando lugar a al menos 24 heterodímeros conocidos de integrinas distintos con diferentes funciones y actividades de unión a ligandos. Las integrinas actúan como moléculas de anclaje mediando la adhesión del citoesqueleto celular a la matriz extracelular (MEC). También actúan como moléculas de señalización bidireccional al mediar en la señalización desde el exterior al interior de la célula y viceversa, controlando así una serie de funciones celulares vitales como la adhesión, la polaridad, la diferenciación, la migración y la división celular (36-38). En estados patológicos, la señalización defectuosa de las integrinas puede alterar estas funciones y dar lugar a división, migración y adhesión celular anómala, características propias del cáncer y la metástasis (39-43). Se ha observado que durante los procesos tumorales se produce una desregulación de la expresión de integrinas, en algunos casos mostrando sobreexpresión (β1, β3, β6) y en otra disminución (α2, α3, α4, α5, α7) (39-44) (Tabla I). Estudios previos han demostrado que la proteína MINDIN puede interactuar con las integrinas en neutrófilos y que dicha interacción MINDIN-integrina es fundamental para el reclutamiento de células inflamatorias en algunos modelos in vivo (45,46). Sin embargo, se desconoce si MINDIN puede alterar el perfil de expresión de integrinas en células tumorales y óseas para promover procesos de progresión tumoral y metástasis óseas (45,46).
Basándonos en todas estas observaciones, hipotetizamos que MINDIN puede modificar el perfil de expresión de integrinas en células óseas y tumorales de próstata para potencialmente favorecer el desarrollo de las metástasis en hueso. Para ello, en el presente trabajo estudiamos los efectos de la proteína protumoral MINDIN sobre el perfil de expresión génica en células óseas (osteoblastos y osteocitos) y células tumorales de próstata de aquellas integrinas que son clave en el desarrollo de metástasis en hueso.
MATERIALES Y MÉTODOS
Modelo animal
Se utilizaron ratones macho C57BL/6 de tres meses de edad (Charles River, Wilmington, MA) mantenidos en jaulas bajo condiciones estándar: temperatura ambiente de 20 ± 0,5 °C, humedad relativa del 55 ± 5 % y un ciclo de luz/oscuridad de 12 h/12 h. Los animales permanecieron sin restricción de movimiento y recibieron una dieta estándar de pellets (Teklad Global 18 % Protein Rodent Diet, Envigo, Madison, WI) y agua de grifo ad libitum.
La intervención quirúrgica se realizó en condiciones asépticas con los ratones anestesiados mediante inhalación de isoflurano y administración de xilacina (10 mg/kg) y ketamina (25 mg/kg). A través de una incisión en la línea media abdominal inferior, se inyectaron 50 µl en el lóbulo prostático posterior derecho de vehículo (PBS), 5 × 10⁵ células TRAMP-C1 transfectadas con siRNAs scrambled o 5 × 10⁵ células TRAMP-C1 transfectadas con tres siRNAs dirigidos contra MINDIN (s97640, s97638, s87252; Life Technologies, Paisley, Reino Unido). Se consideró una inyección técnicamente correcta cuando la ampolla quedaba localizada dentro del lóbulo prostático. Tras la intervención, la cavidad abdominal, el músculo y la piel se cerraron con grapas quirúrgicas.
Un mes después, se extrajeron los tumores primarios de próstata y las tibias, que se almacenaron en Trizol (Thermo Scientific) para la posterior extracción de ARN y su análisis mediante PCR cuantitativa en tiempo real. Todos los procedimientos fueron aprobados por el Comité Institucional de Uso y Cuidado de Animales de la Universidad San Pablo CEU.
CULTIVOS CELULARES
Para los ensayos del presente trabajo se cultivaron a 37 °C con 5 % de CO2 y 95 % de humedad y con medios suplementados con 1 % de estreptomicina/penicilina las siguientes líneas celulares: células mesenquimales preosteoblásticas de ratón (MC3T3-E1 subclón 4, ATTC, CRL-2593). Estas células fueron cultivadas con medio alfa MEM sin ácido ascórbico (“minimum essential medium”, Thermofisher, A1049001) suplementado con 10 % FBS (suro fetal bovino) y 1 % L-glutamina. Células osteocíticas murinas MLO-Y4 (generosamente cedidas por Lynda Bonewald), cultivadas con medio alfa MEM (Thermofisher, 22571038) suplementado con 2,5 % FBS y 2,5 % de suero de ternero (“calf serum” [CS], Thermofisher, 16010159). Utilizamos la línea de adenocarcinoma prostática de ratón TRAMP-C1 (ATCC® CRL-2730 TM) cultivadas con medio DMEM (“Dulbecco’s Modified Eagle Medium”, Thermofisher, 11965092) suplementado con 10 % FBS y 1 % L-glutamina.
Las células se sembraron en placas de cultivo de 6 pocillos y a las 24 horas se estimularon con MINDIN (5 ng/mL) durante 6 o 24 horas. Tras la estimulación, cada muestra se recogió en Trizol para la posterior extracción de ARN total y análisis por PCR cuantitativa en tiempo real.
SILENCIAMIENTO CELULAR
Las células TRAMP-C1 se silenciaron con una mezcla de tres siRNA (cada uno a 20 nM)
dirigidos a diferentes secuencias codificantes de MINDIN de ratón (s97640; s97638; s87252) (Life Technologies, Paisley, Reino Unido) utilizando lipofectamina RNAiMax (Life Technologies) y siguiendo las instrucciones del fabricante. Se utilizó un silenciador “scrambled” no dirigido a ninguna secuencia concreta del genoma (siRNA-A de control, Santa Cruz Biotechnology, Dallas, TX) como control negativo para verificar la especificidad de los cambios dependientes de los siRNAs de MINDIN en los diferentes parámetros evaluados. La eficacia del silenciamiento de MINDIN, se evaluó mediante PCR en tiempo real: a las 24 horas fue 0,05 ± 0,0060 vs. 1 ± 0,03; p < 0,0001; a las 48 horas 0,15 ± 0,1 vs. 1 ± 0,07; p < 0,001 y finalmente, tras 15 días fue 0,4 ± 0,13 vs. 1 ± 0,01; p < 0,001.
REACCIÓN EN CADENA DE LA POLIMERASA EN TIEMPO REAL (PCR)
El ARN total se aisló mediante un procedimiento estándar (Trizol, Life Technologies), y 2 µg de ARN de cada muestra se retrotranscribieron con un kit de retrotranscripción de alta capacidad de cDNA (“High capacity RNA to cDNA Kit”, Thermofisher, 4387406) siguiendo las instrucciones del fabricante.
El estudio de expresión por PCR en tiempo real se realizó en base a la emisión de fluorescencia del fluorocromo SYBR Green premix ex Taq (Takara, Otsu, Japón), utilizando un sistema ABI PRISM 7500 (Applied Biosystems). El número de copias de ARNm se calculó para cada muestra utilizando el valor del ciclo umbral (Ct). Los genes 18S o β-ACTINA (usado como control constitutivo de expresión) se amplificaron en paralelo como genes control, permitiendo el calculó del número de pasos de amplificación requeridos para alcanzar una intensidad arbitraria Ct. La expresión relativa de los genes se definió como la expresión relativa en comparación con el control calculada como 2-ΔΔCt, donde ΔΔCt = ΔCt tratamiento - ΔCt control y ΔCt = Ct gen problema - Ct gen control (18S/ β-ACTINA). La expresión génica de muestras de animales se representó como puntos de datos individuales calculando 2-ΔCt, como se ha descrito previamente (57). La especificidad de cada amplicón se confirmó como la presencia de un único pico en la curva de disociación para cada reacción de qPCR.
ANÁLISIS ESTADÍSTICO
Los datos se encuentran expresados como medias ± error estándar. Se analizó la distribución de los datos y dado que no se ajustaban a una distribución normal, las diferencias entre los grupos experimentales se evaluaron mediante análisis de la varianza no paramétrico (Kruskal-Wallis). La determinación de las posibles diferencias entre los grupos experimentales se realizó mediante las pruebas de Dunn o de Mann Whitney. Para realizar los análisis estadísticos, así como para detectar outliers, se utilizó el programa GraphPad Prism. En la exclusión de los outliers se siguió siguiendo los criterios estándar basados en la desviación típica atendiendo al análisis del programa. Se consideró p < 0,05 como valor estadísticamente significativo.
RESULTADOS
La expresión de MINDIN en tumores primarios de próstata modifica la expresión génica de las integrinas en próstatas y tibias de ratones
En este trabajo, caracterizamos los patrones de expresión génica de integrinas que podrían favorecer la metástasis de células tumorales de próstata en el microambiente óseo. Utilizamos un modelo de ratón C57BL/6, que recapitula la progresión del cáncer de próstata, de hiperplasia a neoplasia intraepitelial prostática para potencialmente metastatizar a ganglios linfáticos, pulmones y hueso. En este modelo, previamente desarrollado, 1 mes tras la inyección ortotópica de células de cáncer de próstata TRAMP-C1 se produjo la sobreexpresión del marcador tumoral PSCA (1966 ± 834 vs. 1 ± 0,4; p = 0,024) y de MINDIN (714,25 ± 348,32 vs. 1 ± 0,3; p < 0,0001) (34), en el grupo tumoral en comparación con el control, indicando el establecimiento del tumor primario en esta temporalidad. Los tumores de próstata generados por células TRAMP-C1 silenciadas con MINDIN mostraron una disminución drástica de la expresión de MINDIN (28,57 ± 16,6 vs. 714,25 ± 348,32; p = 0,0012) sin afectar a la expresión del marcador de carga tumoral PSCA (1136,3 ± 315,3 vs. 1966 ± 834; p < 0,43), en comparación con el grupo tumoral que expresa MINDIN (33,34). En este modelo, al no observarse cambios en la expresión de PSCA ni de MINDIN en las tibias, podemos decir que no se ha producido metástasis de tumor al hueso al tiempo estudiado (33).
No obstante, sí habíamos observado previamente cambios en los huesos del modelo reflejados en un incremento en la expresión génica del marcador de resorción ósea TRAP y modificación de la microarquitectura ósea; cambios que se revirtieron cuando MINDIN fue silenciada en el tumor primario (33).
Dado que se han descrito alteraciones en los niveles de integrinas en la progresión tumoral, siendo posibles moléculas a través de las cuales MINDIN podrían estar ejerciendo sus acciones realizamos un estudio de perfil de integrinas. En este modelo observamos que, de las distintas integrinas clave en metástasis óseas estudiadas (Figs. 1A-E y 2A-E), el establecimiento de tumores prostáticos con sobreexpresión de MINDIN indujo únicamente incremento de la expresión génica de la integrina β6 en los tumores primarios de próstata (Fig. 1E) y también en las tibias de ratones (Fig. 2E). Los cambios observados se revirtieron cuando MINDIN fue silenciada en el tumor primario de próstata (Figs. 1E y 2E). Estos resultados indican que MINDIN es capaz de modular la expresión de la integrina β6 tanto en el tumor primario como en el hueso, donde aún no parece haberse establecido el tumor. Esto podría sugerir que la modificación del perfil de integrinas podría considerarse como un cambio que promueva la formación del nicho premetastásico óseo.
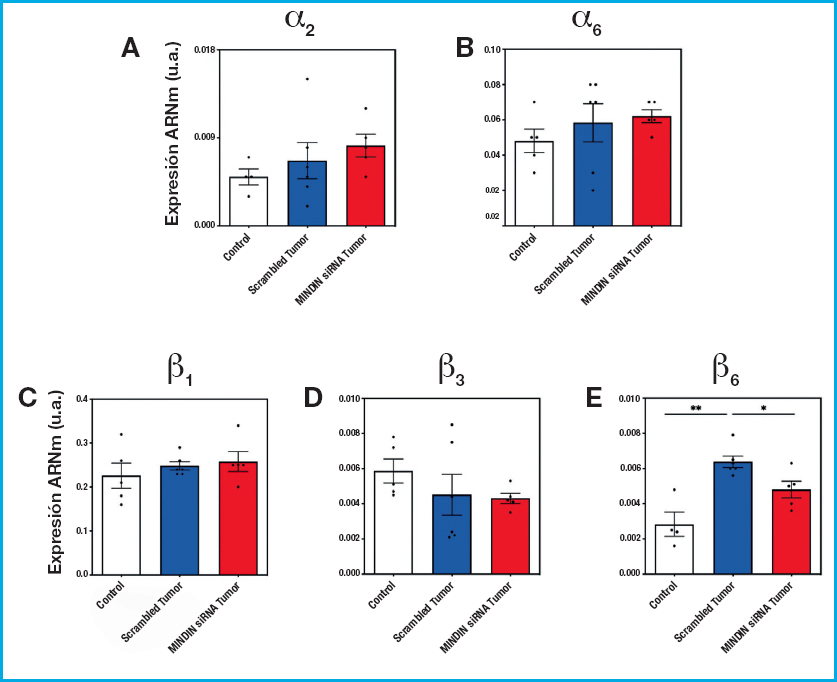
Figura 1 MINDIN induce la sobreexpresión de la integrina β6 en tumores de próstata en un modelo in vivo de ratón. Expresión de ARNm de las integrinas (A) α2, (B) α6, (C) β1, (D) β3 y (E) β6 en próstatas de ratones evaluadas mediante PCR en tiempo real. Los datos se representan como la media ± SEM (n = 4-6 por grupo). *p < 0,05; **p < 0,01. Las muestras utilizadas son muestras de un modelo animal desarrollado y publicado previamente (33,34). Se usó como control endógeno el gen 18S.
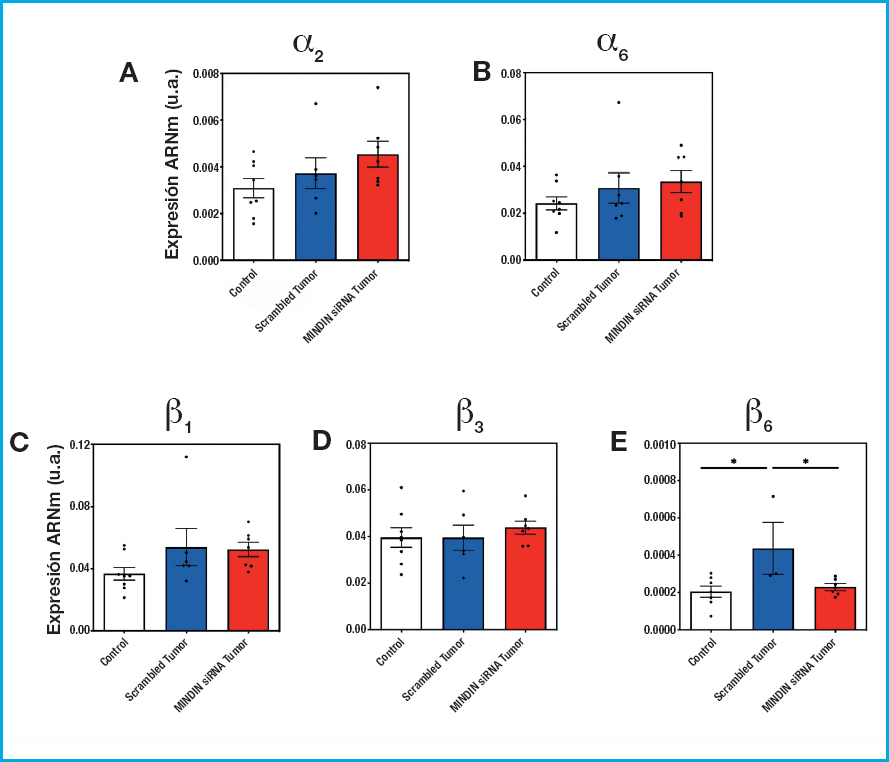
Figura 2 MINDIN induce la sobreexpresión de la integrina β6 en tibias de ratones con tumor de próstata. Expresión de ARNm de las integrinas (A) α2, (B) α6, (C) β1, (D) β3 y (E) β6 en tibias de ratones evaluadas mediante PCR en tiempo real. Los datos se representan como la media ± SEM (n = 3-7 por grupo). *p < 0,05; **p < 0,01. Las muestras utilizadas son muestras de un modelo animal desarrollado y publicado previamente (33,34). Se usó como control endógeno el gen 18S (33,34).
MINDIN induce modificaciones de la expresión génica de las integrinas en células tumorales prostáticas
Se ha descrito que MINDIN aumenta la adhesión de diferentes tipos de células a la matriz extracelular, incluidos neutrófilos, macrófagos, linfocitos o células tumorales prostáticas (46,58). Así pues, dado que las integrinas son proteínas transmembrana clave en la adhesión de las células a la matriz y teniendo en cuenta la modificación de expresión génica observada de integrina β6 en el tumor primario, nos preguntamos si la secreción de MINDIN por los tumores de próstata podría modificar la expresión de las integrinas para incrementar la adhesión de las células de adenocarcinoma prostático a las superficies óseas. Para ello, usamos células tumorales prostáticas TRAMP-C1 estimuladas con MINDIN. Se observó un incremento en la expresión de la integrina β6 tras la estimulación con MINDIN durante 6 o 24 horas (Figs. 3 A-B). Además, se observó que, el silenciamiento de MINDIN, durante 24 horas, en las células tumorales TRAMP-C1, ocasionaba una disminución significativa de la integrina β6 (Fig. 3C). A pesar de que se observa un incremento en los niveles de expresión de la integrina α2 tras 24 horas de estimulación con MINDIN, dicho incremento no alcanzó significancia estadística (p = 0,117).
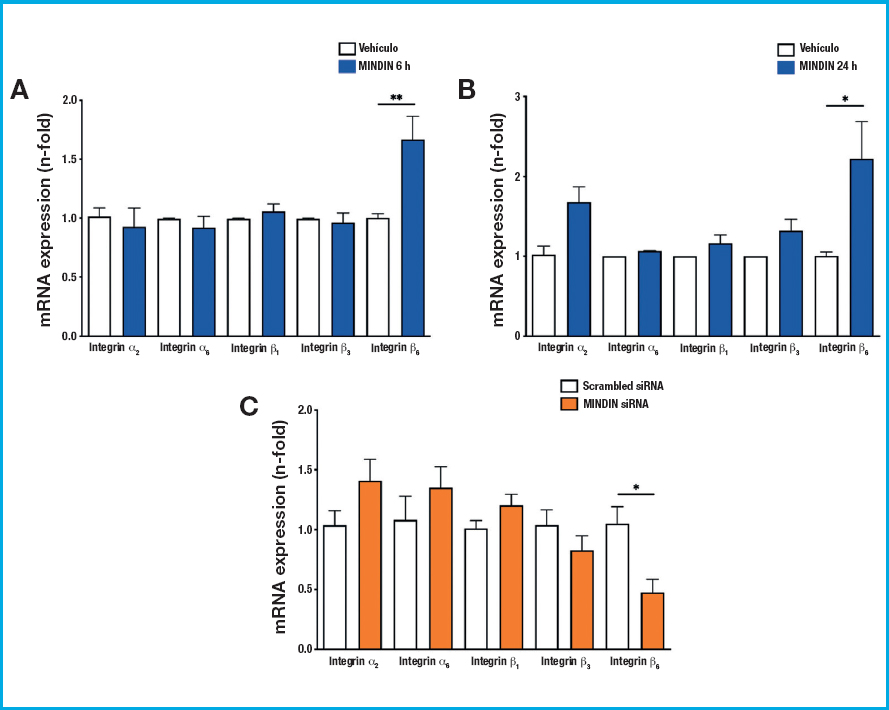
Figura 3 MINDIN induce la sobreexpresión de la integrina β6 en células tumorales prostáticas. Expresión de ARNm de las integrinas α2, α6, β1, β3 y β6 en células tumorales prostáticas TRAMP-C1 estimuladas con MINDIN (A) 6 h, (B) 24 o (C) con MINDIN silenciada evaluadas mediante PCR en tiempo real. Los datos se representan como la media ± SEM de tres experimentos independientes por triplicado. *p < 0,05 frente al control; **p < 0,01 frente al control. Se usó como control endógeno el gen de la β-ACTINA.
MINDIN induce modificaciones de la expresión génica de las integrinas en células osteoblásticas y osteocíticas
Con objeto de averiguar si MINDIN podía también modificar el perfil de expresión de integrinas en células óseas, analizamos los efectos de MINDIN en diferentes células óseas, incluyendo las células osteoblásticas MC3T3-E1 y las células osteocíticas MLO-Y4. En las células osteobásticas MC3T3 se observó un aumento de la expresión génica de la integrina β6 tanto a 6 como a 24 horas de estimulación con MINDIN (Figs. 4A-B).
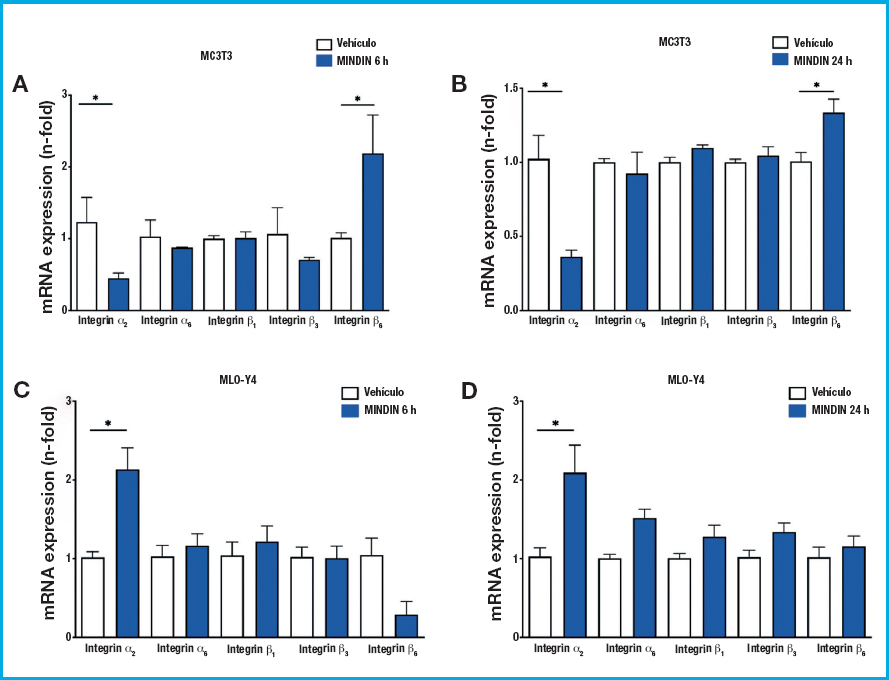
Figura 4 MINDIN induce la sobreexpresión de la integrina β6 en osteoblastos y la integrina α2 en osteocitos. Expresión de ARNm de las integrinas α2, α6, β1, β3 y β6 en osteoblastos MC3T3 estimuladas con MINDIN (A) 6 h o (B) 24 y osteocitos estimulados con MINDIN (C) 6 h o (D) 24 h evaluadas mediante PCR en tiempo real. Los datos se representan como la media ± SEM de tres experimentos independientes por triplicado. *p < 0,05. Se usó como control endógeno el gen de la β-ACTINA.
Sin embargo, en las células MLOY4 no se observó un incremento de la integrina β6 (p = 0,1) tras 6 horas de estimulación con MINDIN, si no que se produjo un incremento de la integrina α2. Estos datos sugieren que dependiendo de del tipo celular diana, MINDIN podría modificar la expresión de diferentes integrinas (Figs. 4B-C).
En su conjunto los datos del presente trabajo indican que MINDIN es capaz de modificar el perfil de transcripción, tanto en células óseas como tumorales, de algunas integrinas relacionadas con la progresión tumoral y el establecimiento de metástasis.
DISCUSIÓN
Las metástasis óseas son dolorosas, difíciles de curar y con un bajo pronóstico de supervivencia. Los tumores primarios crean nichos premetastásicos favorables a las células tumorales en órganos secundarios que derivan posteriormente en el desarrollo de metástasis (59). Además, en la fase inicial de la formación del nicho premetastásico, las células tumorales primarias producen diversos factores solubles para desencadenar la formación de un nicho premetastásico inmaduro (59). Por lo tanto, es clave identificar los factores que regulan las interacciones tumor-hueso e incrementar nuestro conocimiento en los mecanismos que los regulan para desarrollar nuevos enfoques terapéuticos. En este trabajo identificamos a MINDIN, proteína de matriz extracelular secretada por tumores de próstata, como un factor que puede inducir y modular la expresión génica de integrinas en el tumor primario y en el hueso. Estos cambios de expresión de integrinas podrían incrementar la adhesión de las células tumorales al hueso y favorecer el desarrollo de metástasis óseas, por lo que podrían ser posibles dianas terapéuticas frente a la progresión del cáncer de próstata.
La desregulación de la expresión génica de MINDIN se ha documentado en varios tumores humanos, como el cáncer de próstata (15,16), el cáncer gástrico (60) y el cáncer de ovario (61). Se ha descrito que la expresión de MINDIN es mayor en muestras de pacientes con cáncer de próstata más agresivo y peor pronóstico, y aun mayor en aquellos con metástasis óseas (16,17). La evaluación de MINDIN mediante inmunotinción de tumores con diferentes puntuaciones de Gleason reveló que los niveles de MINDIN eran más altos en los individuos con cáncer de próstata con metástasis ósea, seguidos de los individuos sin metástasis ósea, hiperplasia y control (16,17). También se ha demostrado que MINDIN es un ligando para las integrinas, siendo las interacciones MINDIN-integrina críticas para el reclutamiento de neutrófilos, macrófagos y linfocitos T en modelos inflamatorios in vivo (46,58). Además, se ha observado que MINDIN regula la expresión de Rho GTPasa tras interactuar con las integrinas α4β1 y α5β1, contribuyendo al desarrollo tumoral del carcinoma de colon y el carcinoma hepatocelular (58).
En ratones macho C57BL/6 de un modelo animal previamente publicado (33,34), observamos que los tumores inducidos por las células tumorales prostáticas TRAMP-C1 provocan cambios en la expresión génica de las integrinas, produciendo un incremento de la expresión de la integrina β6 dependiente de MINDIN en los tumores primarios de próstata. Aunque no se observen cambios de MINDIN ni de PSCA en hueso, es decir que no hubo presencia detectable de metástasis en el hueso, sí se observó un incremento de la expresión de la integrina β6 en las tibias de los ratones tumorales frente al control, cambios que se podrían relacionar con modificaciones de la expresión génica de TRAP y de la microarquitectura ósea que se ha observado previamente (33), estos resultados sugieren que el cambio de expresión de integrinas se podría asociar a la formación de nichos premetastásicos óseos. Sin embargo, se requieren más estudios para confirmar que este incremento es dependiente de MINDIN.
Datos previos de nuestro grupo revelaron que MINDIN podría ser un factor clave que promueve el aumento de la adhesión de células de adenocarcinoma de próstata a superficies óseas (34). Además, se ha demostrado que MINDIN induce la activación de la vía de la quinasa ERK (34) en células de adenocarcinoma prostático. Para que se produzca un aumento en la adhesión suele ser necesario un incremento en la expresión de proteínas de unión a matriz, como las integrinas (62). También se ha documentado que la proteína MINDIN es capaz de interactuar con distintas integrinas en células del sistema inmune y tumorales (60,63). Por lo tanto, es posible que MINDIN se una a integrinas específicas en células de cáncer de próstata para mejorar su adhesión a la matriz extracelular ósea. A este respecto, se ha observado una relación entre las integrinas y las quinasas Fak y Src con la adhesión celular (64). Datos previos, muestran la acción supresora de los inhibidores de las quinasas Fak y Src sobre la capacidad de las células óseas para promover la adhesión de las células TRAMP-C1, lo que sugiere una interacción entre estas quinasas y las integrinas en la adhesión de las células de cáncer de próstata al hueso (33). Sin embargo, se desconoce qué integrinas podrían ser las implicadas en la interacción de las células tumorales con MINDIN para promover la adhesión celular (33). En este trabajo demostramos que la estimulación de las células tumorales prostáticas con MINDIN induce un incremento de la expresión de la integrina β6, aumento que se ve revertido cuando se silencia MINDIN en las células tumorales, indicando una posible dependencia de la expresión de β6 con MINDIN. Cabe destacar que diversos estudios han mostrado que la integrina αvβ6 participa activamente en la activación de TGF-β (56,65), la remodelación de la matriz extracelular regulando la expresión de MMP2 (56) y facilitando la adhesión al endotelio (66), lo que favorecería la colonización del entorno óseo. Sin embargo, nuestros datos no implican necesariamente que MINDIN se una a la integrina β6 de manera directa.
La progresión a carcinoma invasivo y metastásico implica profundas alteraciones en la estructura y función epitelial, así como la alteración ósea para albergar el desarrollo metastásico. Las integrinas son mediadores esenciales de la tumorogénesis, la adhesión y la migración. En particular, se ha observado que la alta expresión de β6 en carcinomas primarios de colon, los carcinomas de células escamosas, los tumores pancreáticos y de mama actúa como marcador pronóstico de enfermedad agresiva e incremento de la mortalidad de estos pacientes (67-70). Se ha observado que el patrón de expresión de la integrina β6 es muy heterogénea en los tumores primarios de próstata; se encuentra aumentada su expresión en los casos de cáncer de próstata metastásico óseo, mientras que su expresión es indetectable en los casos de tumores de próstata neuroendocrino (55,56,71,72).
Por otro lado, la unión de MINDIN a las integrinas de osteoblastos y osteocitos podría desencadenar señales en estas células óseas para facilitar la adhesión de las células tumorales de próstata. Los efectos de MINDIN sobre el hueso no solo se restringen a la modificación de expresión de integrinas, sino que abarcan también acciones de esta proteína sobre la proliferación, diferenciación de los osteoblastos y estimulación de la vía de señalización β-catenina, así como la modulación de diferentes genes implicados en la formación y remodelación ósea (por ejemplo, Runx2, osteocalcina, osterix, OPG, RANK-L) (33). En el presente trabajo observamos que la estimulación con MINDIN indujo un incremento en la expresión de la integrina β6 en osteoblastos y la integrina α2 en osteocitos, así como una disminución de α2 en osteoblastos, sugiriendo que dependiendo del tipo celular MINDIN podría modificar la expresión de diferentes integrinas. Aunque no se ha descrito ampliamente, la integrina α2β1 es un receptor principal de colágeno tipo I, componente predominante del hueso y se ha demostrado que células tumorales con alta expresión de α2β1 presentan mayor afinidad por tejido óseo, debido a su capacidad de adhesión al colágeno (73).
Sin embargo, en el modelo animal solo se observa modificaciones en la integrina β6, a pesar de que las células mayoritarias en el hueso son los osteocitos. Estos cambios observados en ratones con tumores prostáticos inducidos por implantación directa de células TRAMP-C1 en el lóbulo prostático podrían deberse a que los osteoblastos son células más activas (particularmente en cuanto a producción de colágeno y formación ósea) y con una maquinaria celular diferente a los osteocitos lo que puede influir en que tengan una capacidad diferente para responder frente a proteínas que puedan transportarse en el suero, como es el caso de MINDIN y a que al haber usado un modelo premetastásico temprano (un mes de formación de tumor primario no metastásico) es probable que las concentraciones de MINDIN que hayan podido introducirse en el interior de la matriz, donde están los osteocitos, sean aún muy bajas para observar modificaciones en las integrinas expresadas por los osteocitos.
El conocimiento más detallado de los cambios moleculares que implican la formación del nicho premetastásico óseo, así como de los factores del secretoma que lo inducen, podría aportar nuevas dianas terapéuticas o protocolos de actuación, mejorando así su pronóstico. Los presentes datos muestran que la expresión de MINDIN en tumores primarios de próstata promueve cambios en la expresión de integrinas asociados a modificaciones del microambiente óseo y la expresión génica de las células tumorales de próstata. Nuestros datos podrían sugerir que MINDIN favorece la progresión tumoral y la creación de nichos premetastásicos en hueso mediante la sobreexpresión de la integrina β6 en células tumorales y osteoblásticas Sin embargo, se requieren más estudios (inmunohistoquímicos) para poder dilucidar los cambios que ocurren en los distintos tipos celulares, así como estudios para dilucidar como MINDIN podría influir en la sobreexpresión de la integrina β6 y favorecer el desarrollo tumoral.
Aunque nuestro estudio ofrece nuevos conocimientos sobre el papel de MINDIN en la regulación de integrinas y la posible formación de nichos premetastásicos óseos en cáncer de próstata, presenta algunas limitaciones. En primer lugar, los modelos experimentales utilizados, tanto in vitro (líneas celulares osteoblásticas, osteocíticas y tumorales) como in vivo (modelo murino), pueden no reproducir completamente la complejidad del microambiente tumoral y óseo en humanos. Además, el modelo murino empleado no desarrolló metástasis óseas establecidas, lo que limita la evaluación directa de la progresión metastásica en condiciones clínicas reales. Otro aspecto para considerar es que el tamaño de muestra en los experimentos con animales fue limitado. Cabe destacar que los datos actuales apuntan a un efecto directo de MINDIN sobre la expresión de integrina β6, si bien un estudio de correlación individualizado sería un enfoque valioso para investigaciones posteriores. Por último, aunque se evidenció la modulación diferencial de integrinas por MINDIN en distintos tipos celulares, se requieren estudios adicionales para confirmar los mecanismos moleculares involucrados y su relevancia en contextos humanos. Futuras investigaciones con modelos más representativos y mayor tamaño muestral serán necesarias para validar y ampliar estos resultados.

